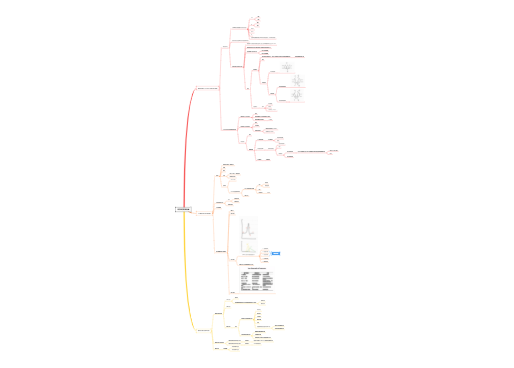
细胞核的概念:细胞核是真核细胞内最大、最重要的细胞器,是真核细胞中遗传信息储存的场所,是真核细胞与原核细胞最根本的区别。除极少数高度特化的细胞外,真核细胞均具有细胞核。例如:高等植物细胞韧皮部成熟的筛管细胞;哺乳动物成熟的红细胞
细胞核的组成:核被膜、染色质/染色体、核仁、核基质
细胞核的功能:细胞核是真核生物遗传物质的主要储存场所,是细胞遗传与代谢的调控中心。细胞核通过复制、分裂将遗传信息传递给子细胞。同时,细胞核中还进行遗传信息的转录,进行初始转录产物的加工,并经由核孔进入细胞质中转译,以此调控细胞的生命活动
细胞核的意义:真核细胞与原核细胞最大的区别即含有完整的细胞核,使遗传物质与细胞质相分离,遗传物质的复制在细胞核中进行,而遗传物质的表达则拥有严格的阶段性与区域性,受到多个层次的调控,这对于真核细胞复杂的生命过程至关重要
核被膜的概念:核被膜是指包被于细胞核最外层的,分离核、质的界膜,能够选择性控制物质进出细胞核,分为内外两层。核被膜的组成:外膜、核周腔、内膜、核纤层、核孔
核被膜将细胞分为核、质两大功能区域,使遗传信息的表达具有严格的阶段性与区域性,避免核、质之间相互干扰,同时起到保护遗传物质的作用
核被膜构成核、质间选择性屏障,细胞核通过核孔复合物调控核、质间物质运输与信息交流
核被膜周期性解体与重建:真核细胞有丝分裂时,核被膜于前期解体,末期重现,进行规律性的解体与重建 有丝分裂前期:核被膜非随机、有区域特异性的解体,形成单层膜泡,核孔复合物消失,核纤层去组装
有丝分裂末期:核被膜围绕染色体重建,旧核膜与膜泡参与这一过程。首先附着于染色体表面,并相互融合形成双层核膜,同时膜上的某些功能区域相互融合,与蛋白质组装形成核孔复合体
核被膜的解体与重建受到细胞促进成熟因子(MPF)的调控,与核纤层蛋白、核孔复合物蛋白磷酸化与去磷酸化有关
核被膜的基本结构:核被膜由两层平行不连续的单位膜构成,两层膜之间存在20~40nm的空隙,称为核周腔或核周间隙,其宽度随细胞种类与功能的不同而变化。外膜外表面通常伴随核糖体附着,并与粗面内质网相连,核周腔与粗面内质网腔相通。内膜外表面光滑,无核糖体附着。内表面附着有一层致密的纤维网状结构,称为核纤层,其本质为中间丝,具有组织特异性。
核纤层向外与整联蛋白相连,对核被膜起到机械支撑的作用,使遗传物质不因细胞形态的改变而改变。高盐溶液、非离子型去污剂、核酸酶等去除大部分核物质后,核纤层仍能维持核的轮廓。
核纤层内连核骨架,外接细胞质中间丝,使核骨架与细胞质骨架形成连续的整体结构。
核纤层向内与染色体骨架相连,在分裂间期为染色体锚定提供结合位点,稳定染色质。
在有丝分裂前期与末期,核纤层蛋白通过磷酸化与去磷酸化,介导核被膜解体与重建。
两层核膜间平行但不连续,在某些功能区域内,内、外核膜局部融合形成环状孔洞,称为核孔。核孔与一些蛋白质相互整合,形成核孔复合体(NPC), 以调控核、质间的物质运输与信息交流。
核孔复合体的结构:核孔复合体由四部分组成:胞质环、核质环、中央栓、辐 胞质环:胞质环位于核孔边缘细胞质基质一侧,又称外环。环上有八条纤维对称分布伸向细胞质基质
核质环:核质环位于核孔边缘细胞核基质一侧,又称内环。环上有八条纤维对称分布伸向细胞核基质,其末端形成由八个蛋白质构成的环,称为核篮。
中央栓:中央栓位于核孔中心,呈颗粒状or棒状,在核质交换过程中起重要作用。
辐:辐由核孔边缘伸向核孔中心,呈辐射状八重对称,由三个结构域构成,包括柱状亚单位、腔内亚单位和环带亚单位。
核孔复合物的功能:核孔复合体是亲水性核、质交换通道,具有双向性,包括亲核蛋白入核和RNA. RNPs的出核。 易化扩散:分子量小于50x1000D的小分子可以通过易化扩散出入NPC,不与之发生相互作用,不消耗代谢能量。
协助扩散:某些蛋白质可以在中央栓作用下通过协助扩散出入NPC,与NPC发生相互作用,但不消耗代谢能量。
亲核蛋白的输入
RNA and RNPs的输出
染色质与染色体的概念:
压缩DNA以适应其所处空间的大小,降低DNA的可接近性,为DNA行为的调控提供了可能。
保护DNA免受核酸酶等物质的损伤。
确保DNA在细胞分裂时平均分给两个子细胞,保持细胞遗传上的稳定性
有助于基因表达以及亲代染色体间的重组,增加遗传多样性。
常染色质:
异染色质:异染色质是指,在分离间期细胞内折叠、压缩程度较高,形态较收缩,用碱性染料染色时着色较深的染色质。分为结构异染色质and 兼性异染色质。 结构异染色质:
兼性异染色质:
多线染色体(双翅目昆虫):
灯刷染色体(两栖类卵母细胞):
基因组的概念:
原核生物基因组相对较小,结构简单。
原核生物中DNA不与组蛋白结合。
原核生物中非编码区比例较小,基因为连续基因,不含内含子。 真核生物中非编码区比例较大,基因为断裂基因,含有内含子。
原核生物基因表达产物可能为多顺反子mRNA,可转译多种蛋白。 真核生物基因表达产物为单顺贩子mRNA,只转译为一种蛋白。
原核生物基因组表达在时空上有连续性,同时进行。
组蛋白的概念:组蛋白是真核生物染色体的主要成分,富含碱性氨基酸,参与构成核小体的核心结构。包括: H1、H2A、H2B、H3、H4五种组蛋白。
核小体组蛋白(H2A、H2B、H3、H4) C端折叠域:核小体组蛋白中高度保守的结构域,介导组蛋白中间体的组装。
N端尾巴:核小体组蛋白N端可变区域,DNA与组蛋白的结合无需N端尾巴。N端尾巴的功能: N端尾巴能够从核小体特定位置伸出,指导DNA以左手螺旋方式缠绕核小体组蛋白,以储存负超螺旋,有利于DNA局部解旋。
N端尾巴与相邻核小体的相互作用对染色体30nm纤维的形成至关重要。
N端尾巴中存在多个化学修饰位点,能够改变核小体的功能与可接近性。
非核小体组蛋白(H1):非核小体组蛋白又称连接组蛋白,包括H1,每个核小体中含有一个拷贝。分子量约为20kD,有一定组织特异性,保守性较低,与连接DNA结合,保护约20bp DNA免于被核酸酶降解。
非组蛋白的概念:
染色体的一级结构:染色体的一级结构是指10nm核小体串珠结构,基本单位为核小体。 核心八聚体由(H2A、H2B、H3、H4) x2构成。
核心DNA约含147 个碱基对,缠绕核心组蛋白1.75周,无物种特异性。
连接DNA约含20~60个碱基对,H1与之结合,稳定核小体,有物种特异性。
DNA与组蛋白的结合不依赖DNA的序列特异性,是动态结构。
DNA中没有被包装到核小体中的部分与基因表达、调控等行为相关,通常与非组蛋白结合。
组蛋白H1与核小体的结合对染色体高级结构的形成至关重要。H1的结合使DNA与核心组蛋白的缠绕更为紧密,以介导形成染色体的高级结构,并使其可接触性降低,结构稳定。
核心组蛋白N端尾巴与相邻核小体间的相互作用对形成染色体高级结构至关重要。
染色体的二级结构:染色体的二级结构是指30nm螺线管结构,以6个核小体为一圈,旋转排列形成外径约30nm的螺线管。由10nm核小体串珠到30nm螺线管,DNA压缩了6倍。
多级螺旋模型:
绊环模型:
着丝粒与动粒
次缢痕
核仁组织区(NOR)
随体
端粒:端粒是染色体末端的特化结构,由短重复串联序列构成,富含TG,在演化中高度保守。其作用作用维持染色体的独立性与稳定性。
复制起点序列:复制起点序列是细胞周期中DNA复制的起点,维系染色体在细胞分裂过程中的连续性。原核生物只有一个复制起点。真核生物有多个复制起点。
着丝粒序列
端粒序列
染色体的行为:真核细胞染色体的复制与分离发生在细胞周期中的不同时相,有严格的阶段性与区域性。 G1期:DNA准备合成。
S期:DNA合成期,每条染色体DNA完整复制,形成两条染色单体,通过着丝粒相连。
G2期:染色体准备分离。
M期:分裂期,姐妹染色单体通过动粒介导与纺锤体微管相连,动粒牵引两条染色单体分离,向细胞两极移动,在子细胞中平均分配
核仁的概念:
纤维中心(FC):FC是包埋于颗粒组分内的一一个或几个电子密度较低的结构区域,染色较浅。内含rDNA与DNA聚合酶。
致密纤维组分(DFC): DFC是包埋于颗粒组分内的电子密度较高的结构区域,rDNA在FC于DFC交界处转录为pre-rRNA。
颗粒组分(GC): GC由核糖核蛋白(RNP) 构成,是核仁的主要成分,是核糖体亚基的装配、成熟与储存的场所,负责pre-rRNA的加工。
核仁相随染色质:包括核仁周边染色质与核仁内染色质,构成核仁组织区
核仁基质:核仁中的无定形物质,FC、 DFC、GC等均包埋其中。
核仁的功能: rDNA的转录(于FC、DFC 交界)
pre-rRNA的加工(于DFC、GC交界)
核糖体亚单位的组装
核仁周期性消失与重现 有丝分裂前期:核膜解体,核仁缩小,随着染色体的聚集,核仁消失,rDNA转录停止。
有丝分裂末期:核膜重建,核仁物质聚集,之后于NOR周围融合形成新的核仁,rDNA重现开始转录。
核基质的概念
核骨架是存在于真核细胞细胞核中的,由蛋白质构成的空间网络结构。
核骨架与核纤层、中间丝相连,是贯穿于细胞核与细胞质的相对独立的整体结构。
核骨架的主要成分为非组蛋白构成的纤维蛋白,含有少量RNA。

 0
 0
 分享